ATP7A CRISPR Activation Plasmid (h): sc-402387-ACT
- Zielspezies: human
- 20 µg transfektionsfertige, aufgereinigte Plasmid DNA; geeignet für 20 Transfektionen
- ATP7A CRISPR Activation Plasmid (h) ist ein Transkriptionsaktivierungs System (SAM) welches für die gezielte Verstärkung der Genexpression bestimmt ist
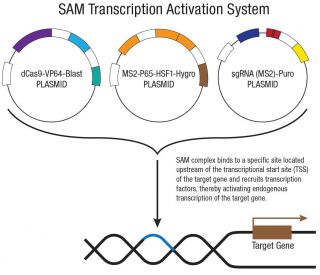
- ATP7A CRISPR Aktivierungsplasmide (h) bestehen aus 3 Plasmiden im Massenverhältnis 1:1:1: ein Plasmid kodiert für die deaktivierte Cas9 (dCas9) Nuklease (D10A und N863A) fusioniert an die Transaktivierungsdomaine VP64 sowie ein Gen für die Blasticidin Resistenz; ein zweites Plasmid kodierend für das MS2-p65-HSF1 Fusionsprotein sowie ein Gen für die Hygromycin Resistenz; ein drittes Plasmid kodierd für die Ziel-spezifische 20 nt guide RNA fusioniert an zwei MS2 RNA Aptamere sowie ein Gen für die Puromycin Resistenz.
- Der entstehende SAM-Komplex (Mediator-Komplex zur synergistischen Gen-Aktivierung) bindet eine sequenzspezifische Region 200-250 nt upstream (in 5'-Richtung) des Transkriptionsstartsignals und rekrutiert dort ständig Transkriptionsfaktoren für eine verstärkte Gen-Aktivierung und Gen-Expression.
- Die vom ATP7A CRISPR-Aktivierungsplasmid (h) und vom ATP7A CRISPR-Aktivierungsplasmid (h2) kodierten gRNAs zielen auf unterschiedliche regulatorische Regionen stromaufwärts der ATP7A-Transkriptionsstartstelle ab. Eines oder beide Designs sind möglicherweise verfügbar
- Nach der Transfektion kann die Effizienz des Gen-Knockouts per Western Blot oder histologisch mit folgendem Antikörper überprüft werden: ATP7A: sc-376467
Bestellinformation
| Produkt | Katalog # | EINHEIT | Preis | ANZAHL | Favoriten | |
ATP7A CRISPR Activation Plasmid (h) | sc-402387-ACT | 20 µg | $397.00 | |||
ATP7A CRISPR Activation Plasmid (h2) | sc-402387-ACT-2 | 20 µg | $397.00 |
ATP7A kodiert eine kupfertransportierende P‑Typ‑ATPase, die die intrazelluläre Kupferverteilung reguliert, indem sie Kupfer aus dem Zytosol exportiert und in den sekretorischen Weg einschleust, wo es zur Metallierung kupferhaltiger Enzyme (Cuproenzyme) genutzt wird. Durch die Kontrolle von Kupferexport und -transport unterstützt ATP7A die Redoxhomöostase, mitochondriale Funktionen und oxidativen Stressantworten sowie die Enzymreifung im Golgi-Netzwerk. Eine Fehlregulation der ATP7A-Aktivität stört das Kupfergleichgewicht und beeinflusst Prozesse wie die Bildung von Bindegewebe und neuroentwicklungsbezogene Signalwege, da die Funktion von Cuproenzymen beeinträchtigt ist. Daher wird ATP7A in Modellen von Störungen des Kupferstoffwechsels und zellulären Stresssignalwegen, die mit kupferabhängiger Enzymaktivität zusammenhängen, umfassend untersucht.
ATP7A Das CRISPR-Aktivierungsplasmid (h) bietet einen gezielten, nicht-destruktiven Ansatz zur Hochregulierung der endogenen ATP7A-Expression, ohne die zugrunde liegende DNA-Sequenz zu verändern.
ATP7A Das CRISPR-Aktivierungsplasmid (h) ist ein aus drei Plasmiden bestehendes synergistisches Aktivierungsmediator-System (SAM), das für eine hocheffiziente, ortsspezifische transkriptionelle Hochregulation des ATP7A-Lokus in menschlichen Zelllinien entwickelt wurde. Das System basiert auf einem katalytisch inaktiven Cas9 (dCas9), das zwei inaktivierende Mutationen (D10A und N863A) trägt, welche die Nukleaseaktivität eliminieren, während die DNA-Bindung erhalten bleibt. Dieses dCas9 ist mit VP64, einem potenten Transkriptionsaktivator, fusioniert und wird zusammen mit einem Blasticidin-Resistenzgen zur Selektion koexprimiert. Das zweite Plasmid kodiert das MS2-p65-HSF1-Fusionsprotein, einen sekundären Aktivatorkomplex, der zusammen mit dCas9-VP64 wirkt, sowie ein Hygromycin-Resistenzgen. Das dritte Plasmid kodiert für eine zielspezifische 20-nt-sgRNA, die an zwei MS2-RNA-Aptamere fusioniert ist, welche den MS2-p65-HSF1-Komplex an die Aktivierungsstelle rekrutieren, begleitet von einem Puromycin-Resistenzgen. Die drei Plasmide werden im Massenverhältnis 1:1:1 verabreicht, um eine ausgewogene Expression aller Systemkomponenten zu gewährleisten.
Nach der Assemblierung am Zielort bindet der SAM-Komplex etwa 200 bp stromaufwärts der ATP7A-Transkriptionsstartstelle, wo VP64, p65 und HSF1 gemeinsam die Transkriptionsmaschinerie rekrutieren und die Hochregulation der endogenen ATP7A-Expression vorantreiben. Im Gegensatz zu nukleaseaktivem Cas9 verursacht dCas9 keine Doppelstrangbrüche und verändert die genomische Sequenz nicht, wodurch der native ATP7A-Locus erhalten bleibt und die Untersuchung von ATP7A-abhängigen Transkriptionsreaktionen am endogenen Locus ermöglicht wird. Dies macht es zu einem wertvollen Werkzeug für Funktionsstudien, die Identifizierung von Zielgenen und die Modellierung der Wiederherstellung des ATP7A-Signalwegs in Tumorzellen mit stillgelegtem oder reduziertem ATP7A-Ausdruck.
Nur für Forschungszwecke. Nicht für diagnostische oder therapeutische Zwecke bestimmt.