GlcAT-S CRISPR/Cas9 KOプラスミド (h): sc-408633
- 対象生物種: human
- 20 µg のトランスフェクション準備済み、精製したプラスミドDNA、~20回トランスフェクション
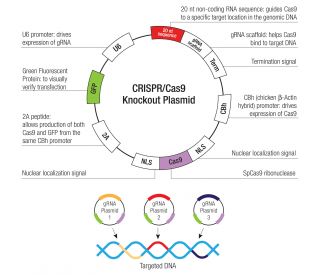
- GlcAT-S CRISPR/Cas9 ノックアウト(KO)プラスミド(h)は、GeCKO v2ライブラリ由来の配列を用いて最大のノックアウト効率を実現するよう設計された、Cas9ヌクレアーゼおよび標的特異的な20塩基対のガイドRNA(gRNA)をそれぞれコードするプラスミドのプールです
- gRNA配列は、Cas9を誘導してGlcAT-Sゲノム座において部位特異的な二本鎖切断(DSBs)を引き起こし、非相同末端結合(NHEJ)を介して遺伝子ノックアウトをもたらします
- ピューロマイシン耐性遺伝子とRFP遺伝子はLoxP部位で挟まれているため、安定したノックアウト細胞株を樹立した後、Creリコンビナーゼ(Creベクター:sc-418923)を用いて選択マーカーを除去することができる。
注文情報
| 製品名 | カタログ # | 単位 | 価格 | 数量 | お気に入り | |
GlcAT-S CRISPR/Cas9 KOプラスミド (h) | sc-408633 | 20 µg | $397.00 |
概要
B3GAT2はグルクロン酸転移酵素S(GlcAT-S)をコードしており、これはゴルジ体に局在する糖転移酵素として、糖鎖成熟過程において特定の糖鎖受容体にグルクロン酸を転移します。この活性は、細胞表面および細胞外マトリックスの糖鎖複合体(グリココンジュゲート)の生合成とリモデリングに寄与し、糖タンパク質のプロセシング、プロテオグリカンに関連する糖鎖構造、さらに糖鎖修飾に依存したシグナル伝達や接着プログラム全般に影響を及ぼします。糖鎖組成を形成することで、GlcAT-Sは受容体の配置、細胞間相互作用、ならびにマトリックス結合イベントを調節し、組織の恒常性維持や細胞分化において中心的な役割を担います。B3GAT2が関与する糖鎖修飾経路の破綻は、細胞間コミュニケーションの変化やストレス応答の異常と関連して調べられており、複数の疾患関連表現型に関与する可能性が示されています。
GlcAT-S CRISPR/Cas9 KOプラスミド(h)は、human細胞株におけるB3GAT2遺伝子の標的破壊を目的として設計されたプラスミドのプールである。各プラスミドは、B3GAT2内の異なる部位を標的とする固有のシングルガイドRNA(sgRNA)と、Streptococcus pyogenes由来のCas9ヌクレアーゼを共発現します。また、これらのプラスミドはGFPをコードしており、蛍光顕微鏡やフローサイトメトリーを用いて、トランスフェクションに成功した細胞を蛍光で識別・濃縮することが可能です。
このマルチガイド設計により、Cas9による二本鎖切断の形成後に、B3GAT2のオープンリーディングフレームを破壊する挿入または欠失(インデル)が生じる可能性が高まります。CRISPR/Cas9システムによって導入されたDNA切断は、内因性の非相同末端結合(NHEJ)経路を通じて修復され、その結果、GlcAT-Sタンパク質の発現を阻害するフレームシフト変異が生じることが頻繁にあります。
このCRISPRノックアウトシステムにより、GlcAT-Sシグナル伝達、機能ゲノミクス研究、がん生物学研究、およびヒト細胞株における治療反応の評価を目的とした、B3GAT2欠損細胞モデルの効率的な作製が可能となる。
主な特徴
- GlcAT-Sの機能に不可欠なB3GAT2エクソンを標的とするsgRNA
導入を簡素化するための、単一プラスミドからのSpCas9およびsgRNAの共発現
トランスフェクトされた細胞を識別するためのGFPレポーター
ノックアウト効率を向上させるための、B3GAT2ゲノム上の複数の部位を標的とするプラスミドのプール
トランスフェクションによる導入に対応
設計バリエーション
CRISPRs +/- HDR
- GlcAT-S CRISPR/Cas9 KOプラスミド(h)およびGlcAT-S CRISPR/Cas9 KOプラスミド(h2)によってコードされるgRNAは、B3GAT2遺伝子座内の異なる部位を標的としています。いずれか一方、または両方の標的設計が利用可能な場合があります。入手可能性については「関連製品」を参照してください。
GlcAT-S HDRプラスミド(h)および GlcAT-S HDRプラスミド(h2)によってコードされるHDRドナー構築体は、プロマイシン耐性カセットとRFPレポーターを含み、これらはB3GAT2ホモロジーアームに挟まれており、CRISPR/Cas9 KO設計に対応する特定のB3GAT2標的部位でのホモロジー依存修復をサポートします。HDRドナーの入手可能性は異なる場合があります。入手可能性については「関連製品」をご確認ください。
研究用のみ。診断用または治療用ではありません。