β3Gn-T1 CRISPR Activation Plasmid (h): sc-411554-ACT
- Zielspezies: human
- 20 µg transfektionsfertige, aufgereinigte Plasmid DNA; geeignet für 20 Transfektionen
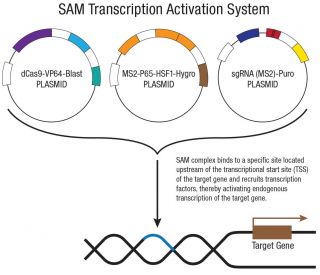
- β3Gn-T1 CRISPR Activation Plasmid (h) ist ein Transkriptionsaktivierungs System (SAM) welches für die gezielte Verstärkung der Genexpression bestimmt ist
- β3Gn-T1 CRISPR Aktivierungsplasmide (h) bestehen aus 3 Plasmiden im Massenverhältnis 1:1:1: ein Plasmid kodiert für die deaktivierte Cas9 (dCas9) Nuklease (D10A und N863A) fusioniert an die Transaktivierungsdomaine VP64 sowie ein Gen für die Blasticidin Resistenz; ein zweites Plasmid kodierend für das MS2-p65-HSF1 Fusionsprotein sowie ein Gen für die Hygromycin Resistenz; ein drittes Plasmid kodierd für die Ziel-spezifische 20 nt guide RNA fusioniert an zwei MS2 RNA Aptamere sowie ein Gen für die Puromycin Resistenz.
- Der entstehende SAM-Komplex (Mediator-Komplex zur synergistischen Gen-Aktivierung) bindet eine sequenzspezifische Region 200-250 nt upstream (in 5'-Richtung) des Transkriptionsstartsignals und rekrutiert dort ständig Transkriptionsfaktoren für eine verstärkte Gen-Aktivierung und Gen-Expression.
- Die vom β3Gn-T1 CRISPR-Aktivierungsplasmid (h) und vom β3Gn-T1 CRISPR-Aktivierungsplasmid (h2) kodierten gRNAs zielen auf unterschiedliche regulatorische Regionen stromaufwärts der B4GAT1-Transkriptionsstartstelle ab. Eines oder beide Designs sind möglicherweise verfügbar
Bestellinformation
| Produkt | Katalog # | EINHEIT | Preis | ANZAHL | Favoriten | |
β3Gn-T1 CRISPR Activation Plasmid (h) | sc-411554-ACT | 20 µg | $397.00 | |||
β3Gn-T1 CRISPR Activation Plasmid (h2) | sc-411554-ACT-2 | 20 µg | $397.00 |
B4GAT1 kodiert β3Gn-T1, eine Glykosyltransferase, die die Synthese und das Remodeling von Glycokonjugaten unterstützt, indem sie β1,3‑N‑Acetylglucosamin-Transferreaktionen katalysiert, die zur Verlängerung von Glykan-Ketten beitragen. Über seine Rolle bei der Glykosylierung von Proteinen und Lipiden beeinflusst β3Gn-T1 Membrantransportprozesse, die Organisation von Rezeptoren sowie Interaktionen mit der extrazellulären Matrix, die die Zell‑Zell‑Kommunikation und adhäsionsabhängige Signalwege prägen. Veränderte Glykosylierungsprogramme unter Beteiligung von B4GAT1 wurden im Kontext der Entwicklungsregulation und krankheitsassoziierter Veränderungen der Glykanzusammensetzung untersucht, wobei Verschiebungen in Oberflächen‑Glykoproteinen die Immunerkennung und Signalnetzwerke beeinflussen können. Diese Eigenschaften machen B4GAT1 zu einem geeigneten Ziel, um die Modulation glykosylierungsabhängiger Signalwege und Phänotypen im Zusammenhang mit Zelloberflächen‑Glykanen zu untersuchen.
β3Gn-T1 Das CRISPR-Aktivierungsplasmid (h) bietet einen gezielten, nicht-destruktiven Ansatz zur Hochregulierung der endogenen B4GAT1-Expression, ohne die zugrunde liegende DNA-Sequenz zu verändern.
β3Gn-T1 Das CRISPR-Aktivierungsplasmid (h) ist ein aus drei Plasmiden bestehendes synergistisches Aktivierungsmediator-System (SAM), das für eine hocheffiziente, ortsspezifische transkriptionelle Hochregulation des B4GAT1-Lokus in menschlichen Zelllinien entwickelt wurde. Das System basiert auf einem katalytisch inaktiven Cas9 (dCas9), das zwei inaktivierende Mutationen (D10A und N863A) trägt, welche die Nukleaseaktivität eliminieren, während die DNA-Bindung erhalten bleibt. Dieses dCas9 ist mit VP64, einem potenten Transkriptionsaktivator, fusioniert und wird zusammen mit einem Blasticidin-Resistenzgen zur Selektion koexprimiert. Das zweite Plasmid kodiert das MS2-p65-HSF1-Fusionsprotein, einen sekundären Aktivatorkomplex, der zusammen mit dCas9-VP64 wirkt, sowie ein Hygromycin-Resistenzgen. Das dritte Plasmid kodiert für eine zielspezifische 20-nt-sgRNA, die an zwei MS2-RNA-Aptamere fusioniert ist, welche den MS2-p65-HSF1-Komplex an die Aktivierungsstelle rekrutieren, begleitet von einem Puromycin-Resistenzgen. Die drei Plasmide werden im Massenverhältnis 1:1:1 verabreicht, um eine ausgewogene Expression aller Systemkomponenten zu gewährleisten.
Nach der Assemblierung am Zielort bindet der SAM-Komplex etwa 200 bp stromaufwärts der B4GAT1-Transkriptionsstartstelle, wo VP64, p65 und HSF1 gemeinsam die Transkriptionsmaschinerie rekrutieren und die Hochregulation der endogenen β3Gn-T1-Expression vorantreiben. Im Gegensatz zu nukleaseaktivem Cas9 verursacht dCas9 keine Doppelstrangbrüche und verändert die genomische Sequenz nicht, wodurch der native B4GAT1-Locus erhalten bleibt und die Untersuchung von β3Gn-T1-abhängigen Transkriptionsreaktionen am endogenen Locus ermöglicht wird. Dies macht es zu einem wertvollen Werkzeug für Funktionsstudien, die Identifizierung von Zielgenen und die Modellierung der Wiederherstellung des β3Gn-T1-Signalwegs in Tumorzellen mit stillgelegtem oder reduziertem B4GAT1-Ausdruck.
Nur für Forschungszwecke. Nicht für diagnostische oder therapeutische Zwecke bestimmt.