Wee 1 Plasmide di attivazione CRISPR (m): sc-423702-ACT
- Specie Target: mouse
- 20 µg di DNA plasmidico purificato, pronto per trasfezione; sufficiente fino a 20 trasfezioni
- Wee 1 Plasmide di attivazione CRISPR (m) è un mediatore sinergico di attivazione (SAM) del sistema di attivazione trascrizionale disegnato per upregolare specificatamente l'espressione genica
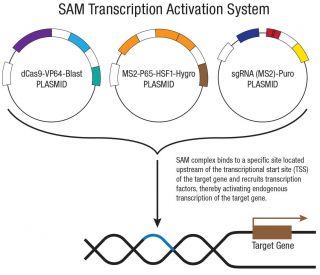
- Wee 1 CRISPR Activation Plasmid (m) consiste di tre plasmidi in proporzione 1:1:1 : un plasmide che codifica la nucleasi (D10A and N863A) Cas9 (dCas9) deattivata fusa al dominio di transattivazione VP64, ed un gene di resistenza alla blasticina; un plasmide che codifica per la proteina di fusione MS2-p65-HSF1, ed un gene di resistenza all'igromicina;un plasmide che codifica un RNA guida di 20 nt target specifico, e un gene di resistenza alla puromicina.
- Il complesso SAM legae una regione sito-specifica circa 200-250 nt a monte del sito di start trascrizionale e fornisce un robusto reclutamento di fattori trascrizionali per un'attivazione altamente efficiente del gene target
- I gRNA codificati dal Wee 1 CRISPR Activation Plasmid (m) e dal Wee 1 CRISPR Activation Plasmid (m2) prendono di mira regioni regolatorie distinte a monte del sito di inizio della trascrizione di Wee1. Uno o entrambi i modelli potrebbero essere disponibili
Informazioni ordini
| Nome del prodotto | Codice del prodotto | UNITÀ | Prezzo | Quantità | Preferiti | |
Wee 1 Plasmide di attivazione CRISPR (m) | sc-423702-ACT | 20 µg | $397.00 | |||
Wee 1 Plasmide di attivazione CRISPR (m2) | sc-423702-ACT-2 | 20 µg | $397.00 |
Wee1 codifica la proteina chinasi WEE1, un regolatore conservato del checkpoint G2/M in risposta al danno al DNA che limita l’ingresso in mitosi tramite la fosforilazione inibitoria di CDK1, coordinando il completamento della fase S, le risposte allo stress replicativo e l’integrità del genoma. Nelle cellule murine, WEE1 integra segnali provenienti da ATR/CHK1 e da altre vie di checkpoint per modulare la tempistica del ciclo cellulare, stabilizzare le forcelle di replicazione bloccate e limitare l’accumulo di rotture a doppio filamento del DNA. La perturbazione dell’attività di Wee1 altera proliferazione, stabilità cromosomica e programmi apoptotici, rendendolo un nodo ampiamente utilizzato per studiare stress replicativo, adattamento del checkpoint e fenotipi simili alla catastrofe mitotica. La deregolazione della segnalazione di WEE1 è spesso analizzata nel contesto dell’accelerazione del ciclo cellulare guidata da oncogeni e delle dipendenze dalle vie di riparo del DNA, a supporto della ricerca meccanicistica in biologia del cancro e nel mantenimento del genoma.
Wee 1 Il plasmide di attivazione CRISPR (m) fornisce un approccio mirato e non distruttivo per sovraregolare l'espressione endogena di Wee1 senza alterare la sequenza di DNA sottostante.
Wee 1 Il plasmide di attivazione CRISPR (m) è un sistema SAM (mediatore di attivazione sinergico) a tre plasmidi progettato per la sovraregolazione trascrizionale altamente efficiente e sito-specifica del locus Wee1 nelle linee cellulari umane. Il sistema è costruito attorno a una Cas9 cataliticamente inattiva (dCas9) che porta due mutazioni inattivanti (D10A e N863A) che eliminano l'attività nucleasica preservando al contempo il legame con il DNA. Questa dCas9 è fusa con VP64, un potente attivatore trascrizionale, ed è coespressa con un gene di resistenza alla blasticidina per la selezione. Il secondo plasmide codifica la proteina di fusione MS2-p65-HSF1, un complesso attivatore secondario che agisce in sinergia con dCas9-VP64, insieme a un gene di resistenza all'igromicina. Il terzo plasmide codifica un sgRNA specifico per il bersaglio di 20 nt fuso a due aptameri di RNA MS2 che reclutano il complesso MS2-p65-HSF1 nel sito di attivazione, accompagnato da un gene di resistenza alla puromicina. I tre plasmidi vengono somministrati in un rapporto di massa 1:1:1 per un'espressione bilanciata di tutti i componenti del sistema.
Una volta assemblato nel locus bersaglio, il complesso SAM si lega a circa 200 bp a monte del sito di inizio della trascrizione Wee1, dove VP64, p65 e HSF1 agiscono in modo concertato per reclutare il machinery trascrizionale e guidare la sovraregolazione dell'espressione endogena di Wee 1. A differenza della Cas9 con attività nucleasica, dCas9 non introduce rotture a doppio filamento né modifica la sequenza genomica, preservando il locus Wee1 nativo e consentendo lo studio delle risposte trascrizionali dipendenti da Wee 1 nel locus endogeno, rendendolo uno strumento prezioso per studi funzionali, l'identificazione di geni bersaglio e la modellizzazione del ripristino della via Wee 1 nelle cellule tumorali con espressione di Wee1 silenziata o ridotta.
Solo per uso di ricerca. Non destinato a uso diagnostico o terapeutico.